Schaum von Phaeocystis globosaPhaeocystis-Algenschaum am Strand
Phaeocystis ist eine Gattung von Algen, die zur Klasse der Prymnesiophyten (Prymnesiophyceae) und damit zum großen Phylum (Abteilung) der Haptophyten (Haptophyta) gehört.
Phaeocystis-Arten sind im marinenPhytoplankton weit verbreitet und können in einem weiten Temperaturbereich („eurythermal“) und Salzgehaltsbereich („euryhalin“) vorkommen.
Mitglieder dieser Gattung leben sowohl im offenen Ozean als auch im Meereis.
Phaeocystis-Arten haben einen vielgestaltigen (polymorphen) Lebenszyklus, der von freilebenden Zellen bis zu großen Kolonien reicht. Auf diese Weise sind einige Arten von Phaecocystis in der Lage, schädliche Algenblüten (en. harmful algal blooms, HABs) zu bilden.
Arten
Kolonien von Phaeocystis globosa in Kultur, Balken 500μm.Kolonien von Phaeocystis antarctica, wichtiger Bestandteil des Phytoplanktons im Rossmeer, nach dem Rückzug des Meereises die Algenblüten der frühen Saison dominierend.
Gattung Phaeocystis
P. amoeboideaBüttner, 1910 (Kieler Bucht, Holtenauer Ufer)
P. antarcticaKarsten, 1905 (Atlantischer Sektor der antarktischen zirkumpolaren Konvergenz)
P. bruceiMangin, 1922 (saisonale Eiszone – seasonal ice zone, SIZ – des Südlichen Ozeans)
P. cordata A. Zingone & M.J. Chrétiennot-Dinet, 2000 (Mittelmeer)
P. pouchetii(Hariot) Lagerheim, 1896 (Typus / Holotyp Spezies, Nordatlantik: entlang der Küste Norwegens von den Lofoten bis zum Varangerfjord)
P. rexAndersen, Bailey, Decelle & Probert, 2015 (Arabisches Meer, nicht gelistet bei WoRMS)
P. scrobiculataØ. Moestrup, 1979 (nicht in Kultur, Neuseeland)
P. sphaeroidesBüttner, 1910 (Kieler Bucht, Möltenorter Ufer)
„P. sp. AC618“ (nicht-klassifizierter Kandidat nach NCBI)
„P. sp. Hongkong2“ (nicht-klassifizierter Kandidat nach NCBI)
„P. sp. PLY559“ (nicht-klassifizierter Kandidat nach NCBI)
„P. sp. Hongkong2“ (nicht-klassifizierter Kandidat nach NCBI)
„P. sp. Santou“ (nicht-klassifizierter Kandidat nach NCBI)
„P. sp. SIC.41345“ (nicht-klassifizierter Kandidat nach NCBI)
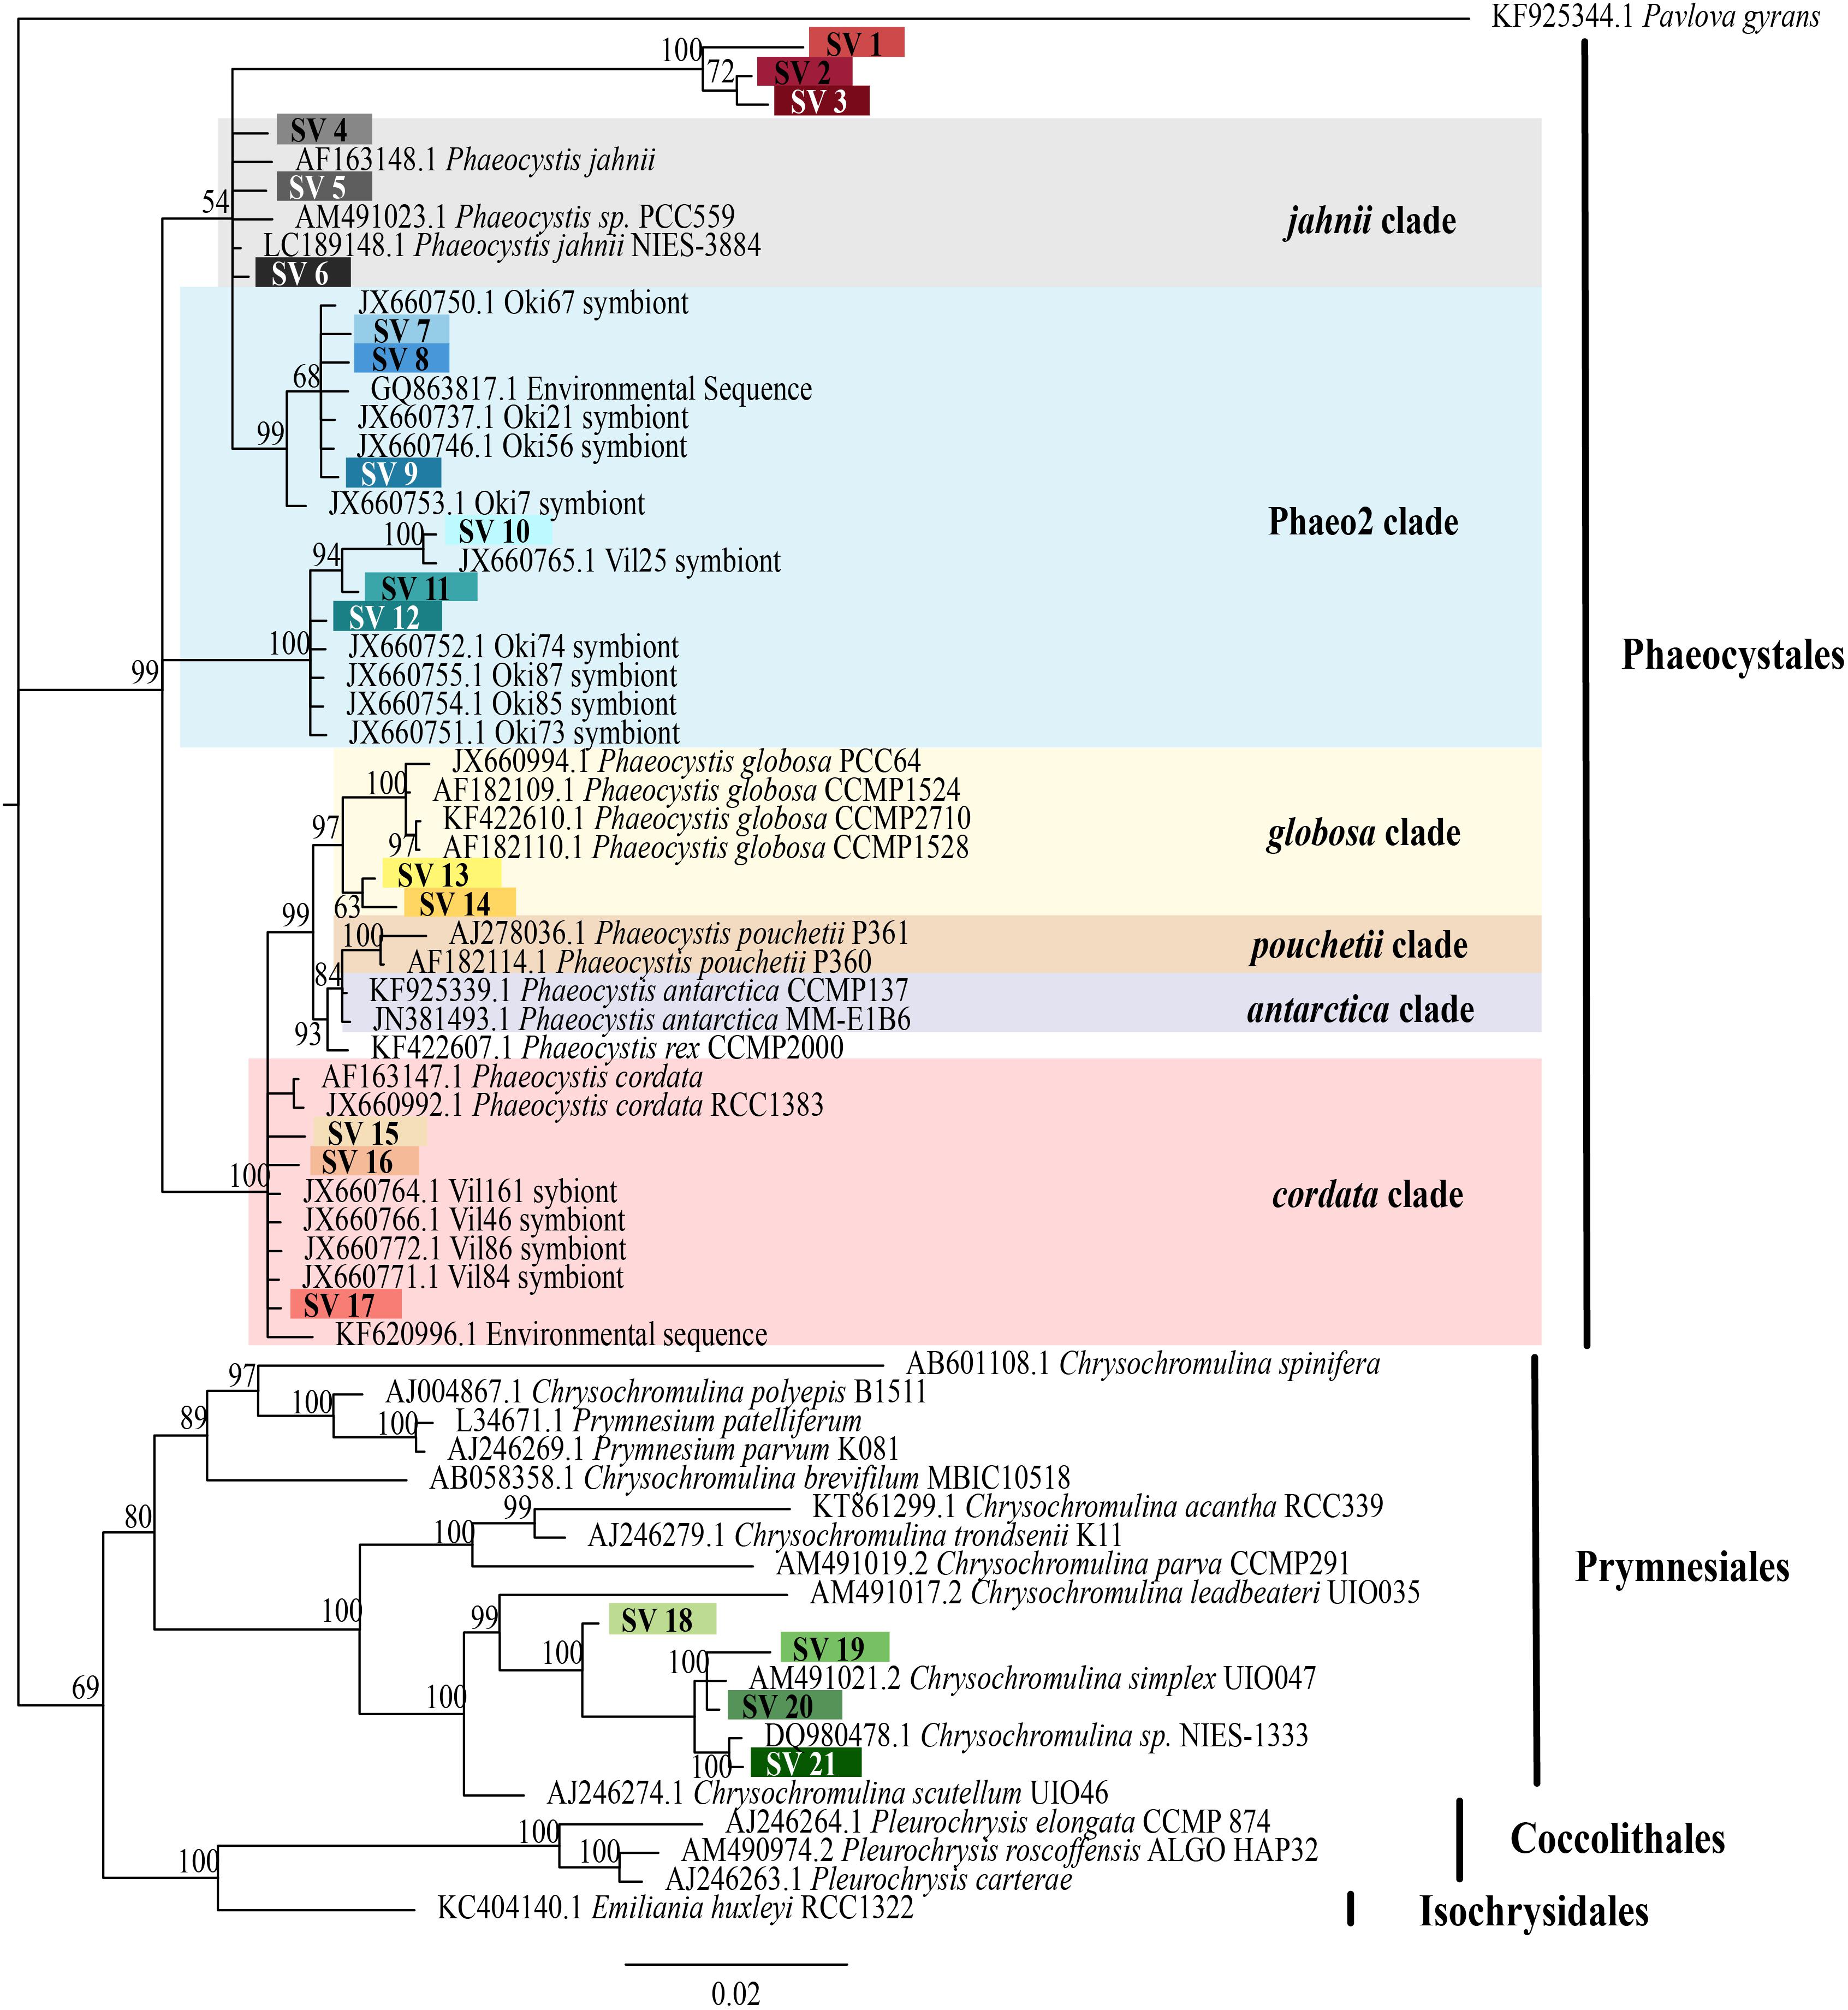
„P. sp. JD-2012“ (nicht-klassifizierter Kandidat nach NCBI) – die bei Brisbin etal. (2018) in Fig.2 angegebenen Zugriffsnummern für die Klade „Phaeo2“ endosymbiotischer Phaeocystis fallen in diese NCBI-Kandidaten-Spezies.
Anmerkungen:
Throndsen (1997) ordnet diese Gattung abweichend in die Ordnung Prymnesiales ein.
Die Spezies Phaeocystis giraudii(Derbès & Solier) De Toni, 1895 wurde in die Gattung Chrysoreinhardia verschoben als Synonym von Chrysoreinhardia giraudii(Derbès & Solier) C. Billard, 2000
Die Spezies Phaeocystis fuscescens(A. Braun} ex Kützing) De Toni 1895 wurde in die Gattung Tetrasporopsis verschoben als Synonym von Tetrasporopsis fuscescens(A. Braun ex Kützing) Lemmermann 1899
Weitere nicht-klassifizierte Kandidaten sind bei NCBI zu finden.
Zu den beiden endsymbiotischen Phaeocystis-Kladen „Phaeo1“ und „Phaeo2“ siehe unten.
Genom
Ein Genomvergleich hat gezeigt, dass die RuBisCO-Spacer-Region (im Plastom, d.h. der Plastiden-DNA, zwischen zwei Untereinheiten des EnzymsRibulose-1,5-bisphosphat-Carboxylase)
unter eng verwandten kolonialen Phaeocystis-Arten hoch konserviert ist.
Sie ist in P. antarctica, P. pouchetii und zwei warm-temperierten Stämmen von P. globosa identisch, es gibt lediglich eine einzige Basensubstitution in zwei kalt-temperierten Stämmen von P. globosa.
Verbreitung und Lebenszyklus
Phaeocystis kann entweder in der Form freilebender Zellen oder als Kolonie existieren.
Ein Sonderfall ist die endosymbiotische Lebensweise.
Fortpflanzung
Ein haploid-diploider Lebenszyklus wurde bisher nur bei P. globosa beobachtet, wird aber auch bei anderen Arten wie P. pouchetii und P. antarctica vermutet.
In diesem Zyklus ist die sexuelle Fortpflanzung bei der Bildung und dem Absterben der Kolonieblüte dominant.
Abgesehen davon wurden zwei unterschiedliche Arten der vegetativen Fortpflanzung beobachtet.
Freilebende Formen
Freilebende Formen von Phaeocystis sind weltweit verbreitet und kommen in einer Vielzahl von marinenLebensräumen vor, darunter Küstenmeere, offene Ozeane, Polarmeere und im Meereis.
Freilebende Zellen können je nach Art eine Vielzahl von Morphologien aufweisen.
Alle Arten können als geschuppte Flagellaten (Geißeltierchen) existieren; bei P. scrobiculata und P. cordata ist dies sogar die einzige beobachtete Form.
Koloniebildende Formen und Algenblüten
Die Bildung schwimmender Kolonien ist eine besondere und kennzeichnende Eigenschaft der Gattung Phaeocystis. In einer solchen Kolonie sind Hunderte von Zellen in eine Matrix aus Polysaccharid-Gel eingebettet, die bei Algenblüten massiv an Größe zunehmen kann.
Bei drei Arten wurden Kolonienbildung beobachtet (P. globosa, P. pouchetii und P. antarctica), diese können auch als ohne Schuppen und Filamente existieren.
Bei Kolonien von Phaeocystis kann eine Koloniehaut (en. colony skin) Schutz vor kleineren Zooplanktonfressern und Viren bieten.
Die Allgegenwart und die Bildung großer Algenblüten machen die Gattung Phaeocystis zu einem wichtigen Bestandteil des Kohlenstoffkreislaufs im Ozean. Außerdem produziert PhaeocystisDimethylsulfid (DMS), einen Schlüsselakteur im Schwefelkreislauf.
Die Bildung von Algenblüten in nährstoffreichen Gebieten wird durch die drei koloniebildenden Arten (P. globosa, P. pouchetii und P. antarctica) verursacht. Diese können natürliche Ursache haben (z.B. im Rossmeer, in der Grönlandsee oder in der Barentssee) oder durch anthropogene (menschenverursachte) Einträge hervorgerufen werden (z.B. in der Southern Bight in der südlichen Nordsee oder im Persischen Golf).
Im Allgemeinen blüht P. globosa in gemäßigten und tropischen Gewässern, während P. pouchetii und P. antarctica besser an die kalten Temperaturen angepasst sind, die in arktischen bzw. antarktischen Gewässern herrschen. P. pouchetii toleriert jedoch auch wärmere Temperaturen
und wurde tatsächlich schon in gemäßigten Gewässern gesehen.
Die größten Phaeocystis-Blüten bilden sich in den Polarmeeren: P. pouchetii im Norden und P. antarctica im Süden.
Diese intensive Phaeocystis-Produktivität hält im Allgemeinen etwa drei Monate lang an und überspannt den größten Teil des Sommers auf der Südhalbkugel. Phaeocystis-reiche Ökosysteme stehen in der Regel mit kommerziell wichtigen Beständen von Krebstieren, Mollusken, Fischen und auch Säugetieren in Verbindung. Phaeocystis kann negative Auswirkungen auf höhere trophische Ebenen im marinen Ökosystem und damit auch auf menschliche Aktivitäten (z.B. Fischzucht und Küstentourismus) haben, indem sie während des Abklingens einer Blüte geruchsintensive Schäume an den Stränden bildet.
Phaeocystis-Arten treten als Endosymbionten von Acantharien (Acantharea, informelle Gruppe der Strahlentierchen alias Radiolarien, wohl zu unterscheiden von der Pilzgattung Acantharia) auf.
Ob diese Symbiose einen echten Mutualismus darstellt, bei dem beide Partner profitieren, ist umstritten.
Aus verschiedenen Ozeanbecken gesammelte Acantharien beherbergen unterschiedliche Arten von Phaeocystis als dominante Symbionten:
P. antarctica wird als primärer Symbiont in Acanthariern im Südlichen Ozean (dem Antarktischen Ozean) gefunden.
P. cordata und P. jahnii gehören zu den dominanten Symbionten in Akanthariern der warmen oligotrophen Regionen des Indischen und Pazifischen Ozeans.
Zusätzlich zu den beschriebenen Phaeocystis-Arten machen Sequenzen aus einer mit „Phaeo2“ bezeichneten molekularen Klade oft einen Großteil der aus Acanthariern in warmen Wasserregionen gewonnenen symbiotischen Sequenzen aus (neben denen der sog. Klade „Phaeo1“, wohl zu unterscheiden von den gleichnamigen Kladen der Spezies Phaeodactylum tricornutum)
Bei symbiotischen Phaeocystis-Arten wird ein extremer Zellumbau beobachtet, einschließlich einer drastischen Zunahme der Chloroplastenzahl und einer vergrößerten zentralen Vakuole.
Diese phänotypische Veränderung wird wahrscheinlich vom Wirt induziert, um die photosynthetische Leistung der Symbionten zu erhöhen. Die Endosymbiose wird jedoch zur Sackgasse für Phaeocystis, wenn sie die symbiotischen Zellen unfähig für weitere Zellteilungen macht.
Die Symbiose ist ökologisch relevant, weil sie Brennpunkte der Primärproduktion in nährstoffarmen Regionen schafft.
Es bleibt aber noch zu klären, inwieweit die Symbiose die Evolution von Phaeocystis beeinflusst hat.
Viren
Von den Arten P. globosa und P. pouchetii sind eine Reihe von Virusspezies mit Kandidatenstatus bekannt.
Diese wurden zunächst vorgeschlagen als Mitglieder der Virusgattung Prymnesiovirus, Familie Phycodnaviridae im Phylum Nucleocytoviricota (NCLDV).
Nach neueren Untersuchungen sind einige der Kandidaten jedoch mit Gruppe der sog. „OLPG“ eher der Familie Mimiviridae (oder einer Schwesterfamilie Mesomimiviridae derselben) zuzuordnen.
Anmerkung: In der Prymnesiovirus-Schwestergattung Phaeovirus sind (trotz der Namensähnlichkeit) keine Phaeocystis-infizierende oder -assoziierte Viren bekannt.
Familie Phycodnaviridae, Gattung Prymnesiovirus:
Spezies „Phaeocystis globosa virus“ (PgV)
Spezies „Phaeocystis globosa virus 1“ (PgV-01T, T steht im Akronym für Texel, Niederlande)
Spezies „Phaeocystis globosa virus 2“ bis „11“ (PgV-02T bis PgV-11T)
Spezies „Phaeocystis globosa virus 13“ (PgV-13T)
Spezies „Phaeocystis globosa virus 15“ (PgV-15T)
Spezies „Phaeocystis globosa virus 17“ (PgV-17T)
Spezies „Phaeocystis globosa virus 18“ (PgV-18T)
Spezies „Phaeocystis globosa virus 102“ (PgV-102P, P steht für Plymouth, Südwestengland)
Man vermutet, dass die Algenblüten verursachenden Mikroorganismen durch sie parasitierende Viren kontrolliert werden und diese Viren sogar in der Lage sind, eine Blüte zusammenbrechen zu lassen.
Globale Auswirkungen
Die Gattung Phaeocystis ist ein wichtiger Produzent von 3-Dimethylsulphoniopropionat (DMSP).
DMSP wird von weiteren marinen Mikroben in flüchtige Schwefelverbindungen zersetzt, insbesondere Methanthiol (CH3SH) und Dimethylsulfid (DMS, (CH3)2S).
Ein Großteil des DMS im Meerwasser wird zu Dimethylsulfoxid (DMSO, (CH3)2S=O) oxidiert.
Biogenes DMS trägt jährlich etwa 1.5×10¹⁰kg Schwefel zur Atmosphäre bei und spielt daher eine wichtige Rolle im globalen Schwefelkreislauf, der die Wolkenbildung und möglicherweise die Klimaregulierung beeinflussen kann.
12VéroniqueSchoemann,SylvieBecquevort,JacquelineStefels,VéroniqueRousseau,ChristianeLancelot:Phaeocystis blooms in the global ocean and their controlling mechanisms: a review. In: Journal of Sea Research, Serie: Iron Resources and Oceanic Nutrients - Advancement of Global Environmental Simulations. 53. Jahrgang, Nr.1–2, 1.Januar 2005, S.43–66, doi:10.1016/j.seares.2004.01.008, bibcode:2005JSR....53...43S (englisch).
↑Robert A.Andersen,J. CraigBailey,JohanDecelle,IanProbert:Phaeocystis rex sp. nov. (Phaeocystales, Prymnesiophyceae): a new solitary species that produces a multilayered scale cell covering. In: European Journal of Phycology. 50. Jahrgang, Nr.2, 3.April 2015, ISSN0967-0262, S.207–222, doi:10.1080/09670262.2015.1024287 (englisch).
↑MartinLange,Yue-QinChen,Linda K.Medlin:Molecular genetic delineation of Phaeocystis species (Prymnesiophyceae) using coding and non-coding regions of nuclear and plastid genomes. In: European Journal of Phycology. 37. Jahrgang, Nr.1, 1.Februar 2002, ISSN1469-4433, S.77–92, doi:10.1017/S0967026201003481 (englisch, awi.de[PDF]).
12VéroniqueRousseau,Marie-JosèpheChrétiennot-Dinet,AnitaJacobsen,PeterVerity,StuartWhipple:The life cycle of Phaeocystis: state of knowledge and presumptive role in ecology. In: Biogeochemistry. 83. Jahrgang, Nr.1–3, 13.April 2007, ISSN0168-2563, S.29–47, doi:10.1007/s10533-007-9085-3 (englisch).
↑J.Stefels,L.Dijkhuizen,W.W.C.Gieskes:DMSP-lyase activity in a spring phytoplankton bloom off the Dutch coast, related to Phaeocystis sp. abundance. In: Marine Ecology Progress Series. 123. Jahrgang, 20.Juli 1995, S.235–243, doi:10.3354/meps123235, bibcode:1995MEPS..123..235S (englisch, rug.nl[PDF]).
↑Christiane Lancelot, M.D. Keller, Véronique Rousseau, Walker O. Smith Jr, Sylvie Mathot: Autecology of the marine haptophyte Phaeocystis sp. (sic!), in: David M. Anderson, Allan D. Cembella, Gustaaf M. Hallegraeff (Hrsg.): Physiological ecology of harmful algal blooms, NATO ASI Series G: Ecological Sciences, Band 41, Springer-Verlag, Berlin, 2. Juni 1998, S.209–224, ISBN 978-3540641179 (Buch: freier Volltext) – Der Titel des Artikels wird oft als ‚Autoecology‘ verschrieben.
↑M.E.M.Baumann,C.Lancelot,F.P.Brandini,E.Sakshaug,D.M.John:The taxonomic identity of the cosmopolitan prymnesiophyte Phaeocystis: a morphological and ecophysiological approach. In: Journal of Marine Systems. 5. Jahrgang, Nr.1, 1994, S.5–22, doi:10.1016/0924-7963(94)90013-2, bibcode:1994JMS.....5....5B (englisch).
↑Catharina J.M.Philippart,Gerhard C.Cadée,Wimvan Raaphorst,RoelRiegman:Long-term phytoplankton-nutrient interactions in a shallow coastal sea: Algal community structure, nutrient budgets, and denitrification potential. In: Limnology and Oceanography. 45. Jahrgang, Nr.1, 1.Januar 2000, ISSN1939-5590, S.131–144, doi:10.4319/lo.2000.45.1.0131, bibcode:2000LimOc..45..131P (englisch).
↑C.Lancelot,S.Mathot:Dynamics of a Phaeocystis-dominated spring bloom in Belgian coastal waters. I. Phytoplanktonic activities and related parameters. In: Marine Ecology Progress Series. 37. Jahrgang, 1987, S.239–248, doi:10.3354/meps037239, bibcode:1987MEPS...37..239L (englisch).
1234M. JohanDecelle,RafelSimó,MartíGalí,Colombande Vargas,SébastienColin,YvesDesdevises,LucieBittner,IanProbert,FabriceNot:An original mode of symbiosis in open ocean plankton. In: Proceedings of the National Academy of Sciences. 109. Jahrgang, Nr.44, 30.Oktober 2012, ISSN0027-8424, S.18000–18005, doi:10.1073/pnas.1212303109, PMID 23071304, PMC3497740(freier Volltext), bibcode:2012PNAS..10918000D (englisch). Zu „Phaeo1“ und „Phaeo2“ siehe Fig.1, zu „Phaeo2“ auch Fig.3.
12JohanDecelle:New perspectives on the functioning and evolution of photosymbiosis in plankton. In: Communicative & Integrative Biology. 6. Jahrgang, Nr.4, 30.Juli 2013, S.e24560, doi:10.4161/cib.24560, PMID 23986805, PMC3742057(freier Volltext) – (englisch).
12
Jean-Michel Claverie, Chantal Abergel: Mimiviridae: An Expanding Family of Highly Diverse Large dsDNA Viruses Infecting a Wide Phylogenetic Range of Aquatic Eukaryotes]. In: Viruses. 2018 Sep; 10(9), 18. September 2018, S.506, doi:10.3390/v10090506, PMC6163669(freier Volltext), PMID 30231528, Tab.2
123JônatasAbrahão,LorenaSilva,Ludmila SantosSilva,Jacques Yaacoub BouKhalil,RodrigoRodrigues,ThalitaArantes,FelipeAssis,PauloBoratto,MiguelAndrade,Erna GeessienKroon,BergmannRibeiro,IvanBergier,HerveSeligmann,EricGhigo,PhilippeColson,AnthonyLevasseur,GuidoKroemer,DidierRaoult,Bernard LaScola:Tailed giant Tupanvirus possesses the most complete translational apparatus of the known virosphere. In: Nature Communications. 9. Jahrgang, Nr.1, 27.Februar 2018, doi:10.1038/s41467-018-03168-1 (englisch, nature.com).
↑
Sebastien Santini, Sandra Jeudy, Julia Bartoli, Olivier Poirot, Magali Lescot, Chantal Abergel, Valérie Barbe, K. Eric Wommack, Anna A.M. Noordeloos, Corina P.D. Brussaard, Jean-Michel Claverie: Genome of Phaeocystis globosa virus PgV-16T highlights the common ancestry of the largest known DNA viruses infecting eukaryotes, in: Proc Natl Acad Sci USA 110(26), 25. Juni 2013, S.10800–10805, doi:10.1073/pnas.1303251110, PMC3696832(freier Volltext), PMID 23754393
↑
Yanze Li, Hisashi Endo, Yasuhiro Gotoh, Hiroyasu Watai, Nana Ogawa, Romain Blanc-Mathieu, Takashi Yoshida, Hiroyuki Ogata: The Earth Is Small for “Leviathans”: Long Distance Dispersal of Giant Viruses across Aquatic Environments, in: Microbes Environ. 34(3), September 2019, S.334–339, doi:10.1264/jsme2.ME19037, PMC6759346(freier Volltext), PMID 31378760; insbes. Fig.4. Anm.: Wegen der Platzierung im Stammbaum und DORTIGER Referenz auf Santini (2013) meint Phaeocystis_globosa_virus hier Tethysvirus hollandense, insbesondere PgV-16T. Mit ‘Megaviridae’ werden die erweiterten Mimiviridae, also die Imitervirales bezeichnet, mit ‘Megamimivirinae’ die ganze Familie Mimiviridae und ‚Mesomimivirinae‘ umfasst alle drei Schwesterfamilien der Mimiviridae (Allo-, Meso- und Schizomimivirinae).
↑Said Mougari, Dehia Sahmi-Bounsiar, Anthony Levasseur, Philippe Colson, Bernard La Scola:Virophages of Giant Viruses: An Update at Eleven. In: Viruses. Band11, Nr.8, 2019, ISSN1999-4915, S.733, doi:10.3390/v11080733, PMID 31398856, PMC6723459(freier Volltext) – (englisch).